

Des communautés bactériennes agglutinées et protégées par des polymères biologiques.
En pensant aux bactéries, on pourrait imaginer des cellules isolées nageant librement dans l’eau ou se développant dans une boîte de culture en laboratoire. En réalité, de nombreuses bactéries préfèrent un mode de vie très différent. Lorsqu’elles trouvent une surface appropriée, qui peut être une roche, une dent ou une surface métallique, les bactéries ont tendance à s’y installer, à se multiplier et à s’envelopper d’un matériau semblable à de la colle, formant ainsi un biofilm. Cette matrice extracellulaire produite par les bactéries, un revêtement constitué de sucres, de protéines et d’ADN sécrétés, agit comme une couche protectrice qui ancre les bactéries sur place tout en les protégeant aussi bien de la déshydratation que des désinfectants et des antibiotiques. Bien que de nombreux biofilms soient inoffensifs, voire bénéfiques, ils peuvent aussi poser de sérieux problèmes lorsqu’ils se développent dans des endroits où la présence de bactéries est indésirable.
L’un des défis majeurs posés par les biofilms concerne la sécurité alimentaire. Les équipements de transformation des aliments, comme les tapis roulants, les conteneurs de stockage et les outils de découpe, sont autant de surfaces sur lesquelles les bactéries peuvent se fixer et établir des biofilms. Une fois installées, ces communautés microbiennes deviennent beaucoup plus difficiles à éliminer que des bactéries isolées. Même après un nettoyage et une désinfection de routine, les biofilms peuvent persister dans de minuscules fissures et des zones difficiles d’accès, libérant périodiquement des bactéries qui contaminent les produits alimentaires. Cela contribue aux rappels de produits et aux épidémies d’intoxications alimentaires causées par des agents pathogènes comme Listeria monocytogenes, Salmonella enterica et certaines souches d’Escherichia coli.
En médecine, les biofilms causent de nombreuses infections chroniques et difficiles à traiter. Ils peuvent se développer sur les cathéters, les valves cardiaques et d’autres implants médicaux. Comme les bactéries au sein des biofilms dans l’organisme peuvent être très résistantes aux traitements antimicrobiens et au système immunitaire, les infections deviennent souvent persistantes et nécessitent un traitement prolongé.
Comprendre les constituants des biofilms et la machinerie moléculaire que les bactéries utilisent pour les produire peut permettre de concevoir de nouvelles stratégies qui empêcheraient la formation des biofilms ou qui détruiraient ceux qui existent déjà. Ces efforts peuvent notamment conduire à des améliorations de la sécurité alimentaire, à une réduction des infections nosocomiales et contribuer à conserver l’efficacité des antibiotiques dans la lutte contre la résistance antimicrobienne.
Des câbles de cellulose
L’essentiel de la masse d’un biofilm n’est pas constituée de cellules, mais de polymères de sucres, de protéines et d’ADN sécrétés par ces dernières. Certaines bactéries, dont E. coli et des bactéries du genre Salmonella, produisent de longs filaments de cellulose, le même polymère de glucose qui constitue les parois des cellules végétales, qui forment un réseau maillé résistant. L’enzyme permettant cela est le complexe cellulose synthase BcsA–BcsB (représenté sur la figure 1 à partir des entrées de la base de données des protéines (PDB) 4p00 et 9b8v) 12, un complexe multiprotéique inséré dans la membrane interne bactérienne. La protéine BcsA (représentée en violet sur la figure 1) ajoute un glucose à la fois à partir d’un UDP-glucose et fait passer la chaîne glucidique en croissance (représentée en jaune sur la figure 1) à travers un canal situé dans son domaine transmembranaire. Elle est aidée par six copies de la protéine BcsB, qui forment une structure semi-circulaire au-dessus de BcsA.
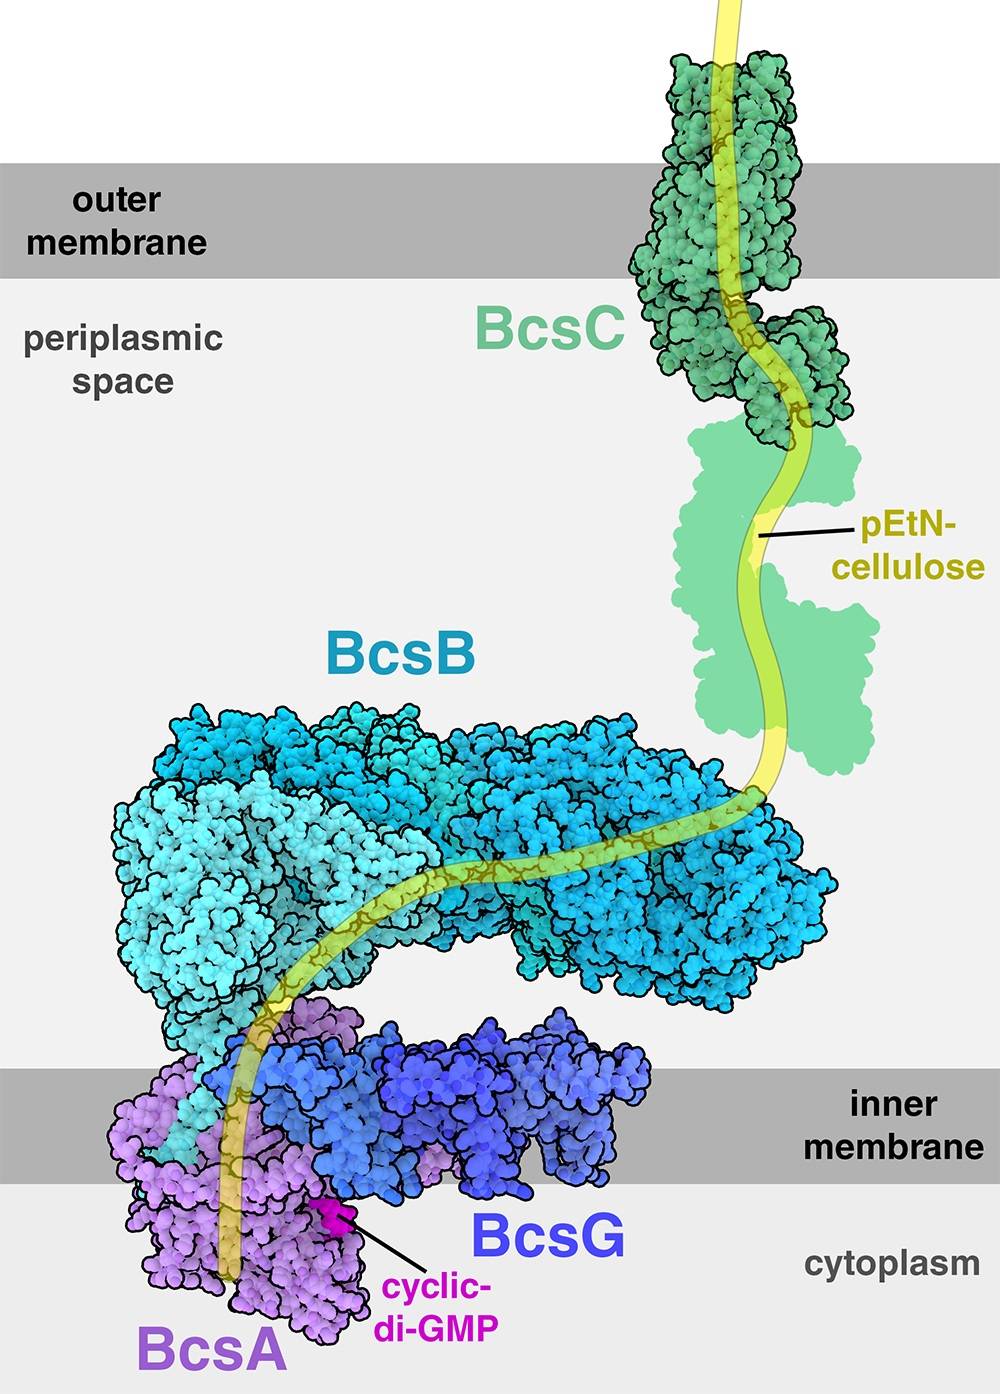
Les protéines BcsA (en violet) et BcsB (en turquoise) forment un complexe activé par la liaison du di-GMP cyclique (en fuchsia), qui produit un câble de cellulose (en jaune). La protéine BcsG (en bleu foncé) modifie le brin de cellulose et forme de la pEtN-cellulose, qui quitte le périplasme par un canal formé par la protéine BcsC. Les domaines de la protéine BcsC dont la structure n’a pas été résolue sont représentés par un contour vert. pEtN : phosphoéthanolamine.
L’activité de BcsA-BcsB est contrôlée par une petite molécule, le di-GMP cyclique, un second messager majeur qui gouverne le choix d’une bactérie entre une vie libre et l’installation dans un biofilm. La liaison du di-GMP cyclique libère une boucle protéique auparavant attachée et ouvre la voie au substrat (vous pouvez observer ce changement de plus près dans la section intitulée Actionner un interrupteur). Ce même signal di-GMP cyclique intensifie aussi la production d’autres molécules adhésives, notamment celle des brins collants de protéines curli, décrits plus bas, et empêche la bactérie de nager en désactivant l’activité flagellaire. L’activité de la protéine BcsA est également régulée par son interaction avec la protéine BcsE (entrées PDB 6ybu et 9fnn, non représentées sur la figure 1), une protéine cytosolique qui agit avec les protéines BcsQ et BcsR pour activer BcsA 1.
Une fois sortie de la membrane interne et arrivée dans le périplasme, la fibrille de cellulose est modifiée, ce qui la rend encore plus collante : trois copies d’une protéine de la membrane interne appelée BcsG (représentée en bleu foncé sur la figure 1) ajoutent des groupements phosphoéthanolamine (pEtN) dérivés de lipides à la chaîne de cellulose en croissance, formant ainsi de la pEtN-cellulose 2. Il est à noter que le domaine catalytique de la protéine BcsG n’a pas été résolu dans la structure publiée et n’est pas représenté sur la figure 1. Le polymère de pEtN-cellulose est libéré à l’extérieur de la cellule après avoir traversé un canal formé par la protéine BcsC (entrée PDB 9b8h, représentée en vert sur la figure 1), une protéine de la membrane externe en tonneau β possédant de nombreux motifs TPR3 qui s’étendent dans le périplasme.
Un échafaudage d’amyloïde
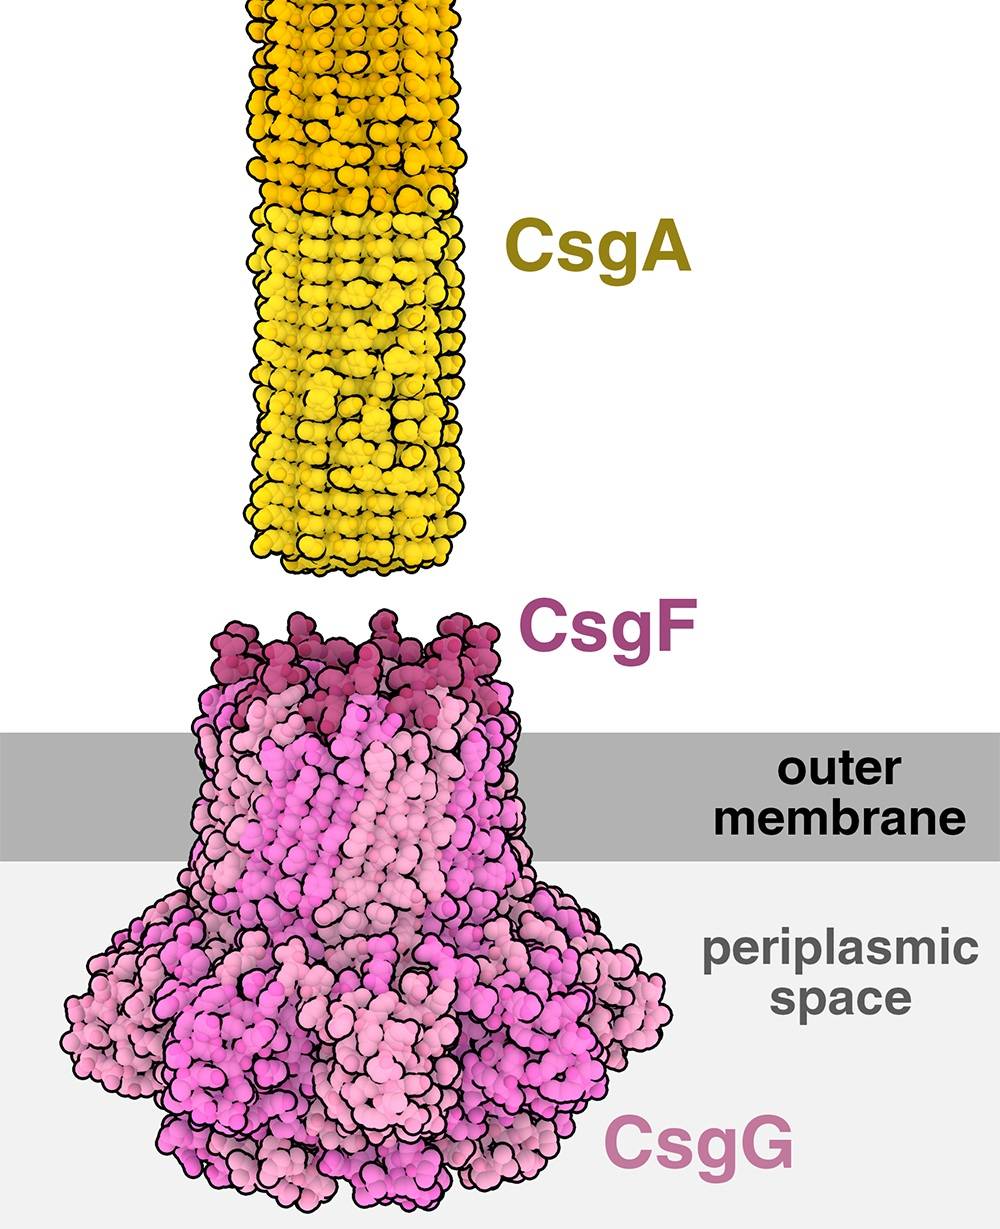
Les fibres de protéines curli sont constituées de sous-unités CsgA répétées (en jaune) qui subissent une translocation à travers les étroites ouvertures du canal formé par les protéines CsgG-CsgF (en rose).
Un autre constituant majeur des biofilms d’E. coli et des bactéries du genre Salmonella est constitué de longs polymères protéiques. La protéine dominante s’appelle curli : il s’agit une fibre collante, semblable à un poil, formée de nombreuses copies empilées de la protéine CsgA (représentées dans des nuances de jaune sur la figure 2, à partir de l’entrée PDB 8c50) 1. Les protéines curli sont des structures amyloïdes fonctionnelles et présentent une structure moléculaire très proche de celle des protéines qui forment les plaques filamenteuses pathologiques de maladies neurodégénératives comme la maladie d’Alzheimer et la maladie de Parkinson. Cependant, dans le cas des protéines curli, ces filaments sont construits de manière délibérée et utilisés comme échafaudage structural.
Les cellules bactériennes ont évolué avec des garde-fous qui garantissent que les fibres de protéines curli se forment de manière contrôlée. Un canal dédié (représenté dans des nuances de rose sur la figure 2), formé par un anneau de symétrie d’ordre 9 de protéines CsgG (entrée PDB 4uv3), constitue un tonneau β à 36 brins surmonté d’un vestibule en forme de cage 1 dans le périplasme. En son centre se trouve un étranglement étroit, large de moins d’un nanomètre. La protéine CsgF (entrées PDB 6si7 et 6l7c) 2 est une protéine accessoire qui se lie au canal CsgG et forme un second site de constriction, que l’on pense important pour la sécrétion et l’assemblage des protéines curli 3. Les pores étroits du complexe CsgG-CsgF contraignent les protéines CsgA qui ne peuvent passer que sous forme de brins dépliés et une par une, ce qui les empêche de s’agréger avant d’émerger sans danger à la surface de la cellule. Plutôt que de dépendre de l’ATP ou d’un gradient ionique dans l’apport d’énergie permettant le transport, la sécrétion est entraînée par la polymérisation de la fibre, qui tire la chaîne vers l’extérieur. La protéine CsgA se replie et forme des fibres avec l’aide d’une autre protéine, CsgB (non représentée sur la figure 2), qui amorce la nucléation des filaments et contribue à les maintenir attachés à la surface de la cellule. On pense que la pEtN-cellulose soutient également ce processus.
Actionner un interrupteur
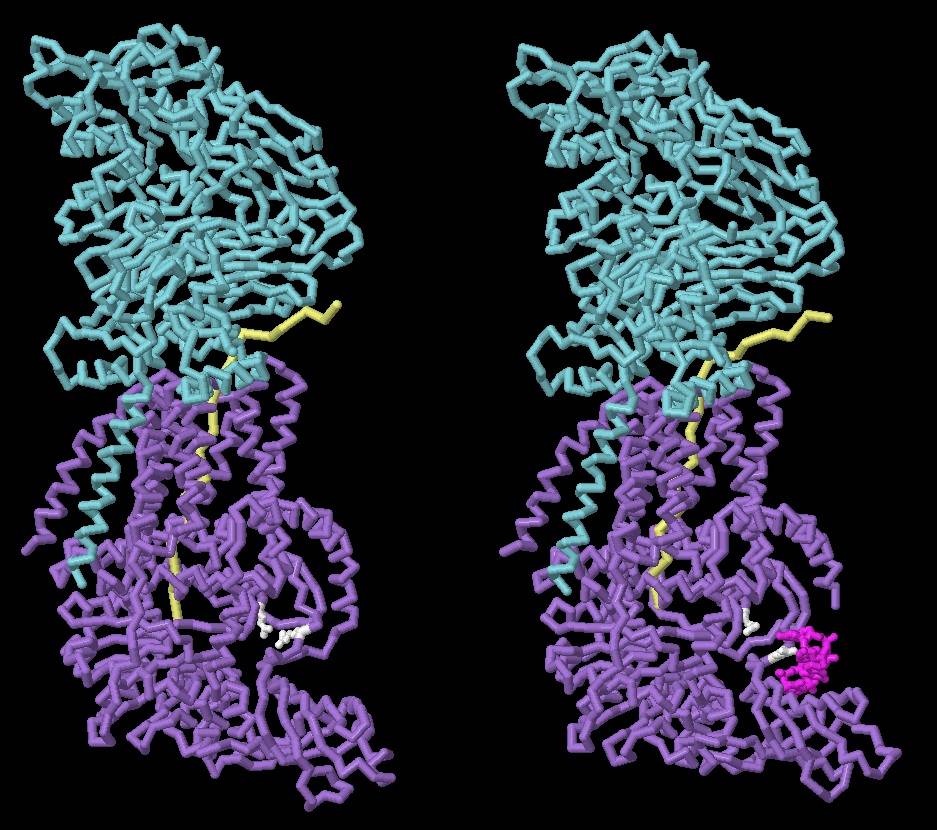
Le complexe BcsA-BcsB (en bleu et violet) sous forme inactive, à gauche, et sous forme active fixé au di-GMP cyclique (en fuchsia). Le passage de la pEtN-cellulose est représentée en jaune.
Vous pouvez observer le complexe BcsA-BcsB dans un état apo1 auto-inhibé (entrée PDB 4hg6), dans lequel une boucle est attachée au-dessus du site actif 2. La liaison du di-GMP cyclique (représenté en fuchsia sur la figure 3) libère la boucle et active l’enzyme (entrée PDB 4p00) 3. Vous pouvez comparer ces deux structures en vous rendant sur la page de l’article d’origine (en anglais), et en cliquant sur l’onglet JSmol de la section Exploring the Structure.
Pour aller plus loin
-
Les biofilms rendent les bactéries plus résistantes aux antibiotiques et aux antimicrobiens. Vous pouvez découvrir d’autres mécanismes de résistance aux antimicrobiens. Vous pouvez également retrouver un article sur le site de Planet-Vie : La résistance aux antibiotiques.
-
Les plantes sont les principaux producteurs de cellulose sur Terre. Vous pouvez observer de plus près comment les plantes utilisent la cellulose synthase pour renforcer leurs parois cellulaires.
-
Vous pouvez lire comment le canal CsgG a été utilisé dans des nanopores de séquençage de l’ADN, où il permet la translocation de l’ADN plutôt que de brins protéiques dépliés.
-
Vous pouvez en apprendre davantage sur les protéines amyloïdes et sur leur implication dans les maladies neurodégénératives. Vous pouvez également retrouver un article sur le site de Planet-Vie : Les maladies neurodégénératives.
Ce texte correspond à la traduction par Cédric Bordi de l’article Molecule of the Month : Biofilms 1 écrit par Janet Iwasa en septembre 2026 sur le site PDB-101, le portail éducatif de la base de données sur les protéines (PDB). Les notes de bas de page ont été ajoutées par le traducteur.
Crédits
Cet article est publié en partenariat avec le site PDB-101, le portail éducatif de la base de données sur les protéines (PDB).