

Le prix Nobel de physiologie ou médecine 2026 a été remis aux Allemands Peter Hegemann et Georg Nagel, ainsi qu’à l’Américain Karl Deisseroth pour « leurs découvertes au sujet des canaux ioniques activés par la lumière et de l’optogénétique ».
L’avancée des connaissances en biologie est intimement liée aux outils disponibles pour étudier le vivant. L’étude du fonctionnement du cerveau a ainsi d’abord été permise par l’observation des lésions cérébrales et des phénotypes résultants, puis par les travaux d’électrophysiologie, puis encore par les techniques d’imagerie cérébrale dont l’IRM fonctionnelle, notamment. Développée à partir des années 2000, l’optogénétique a révolutionné la connaissance du fonctionnement cérébral en permettant d’exciter ou d’inhiber, grâce à la lumière, l’activité de populations de neurones spécifiques modifiées génétiquement pour exprimer une protéine photosensible. Une étape clé a été l’identification de la channelrhodopsine-2, une protéine issue de l’unicellulaire Chlamydomonas reinhardtii, une algue sensible à la lumière, vers laquelle elle se dirige.
Une partie des travaux ayant permis le développement de l’optogénétique a été réalisée par l’équipe de Peter Hegemann. L’enregistrement des courants électriques à travers la membrane de C. reinhardtii a permis de montrer que la dépolarisation de cette membrane intervient extrêmement rapidement après une stimulation lumineuse (en quelques microsecondes) 1, alors que, pour d’autres systèmes biologiques sensibles à la lumière, la variation de potentiel de membrane est bien plus longue à se produire. Par exemple, la bactériorhodopsine de l’archée halophile Halobacterium halobium et l’halorhodopsine de l’archée Natronomonas pharaonis, caractérisées dès les années 70, sont toutes les deux des pompes à ions qui font passer lentement les ions contre leur gradient électrochimique. Chez l’être humain, l’émission d’un signal électrique suite à la stimulation des opsines des cellules photoréceptrices de la rétine est également longue, car dépendante d’une cascade de transduction. Pour expliquer la rapidité de la dépolarisation de la membrane de C. reinhardtii, l’équipe de Peter Hegemann supposa que la même protéine pourrait à la fois être responsable de la détection de la lumière et de l’entrée d’ions provoquant la dépolarisation de la membrane. Autrement dit, que la dépolarisation observée serait due à un canal ionique sensible à la lumière.
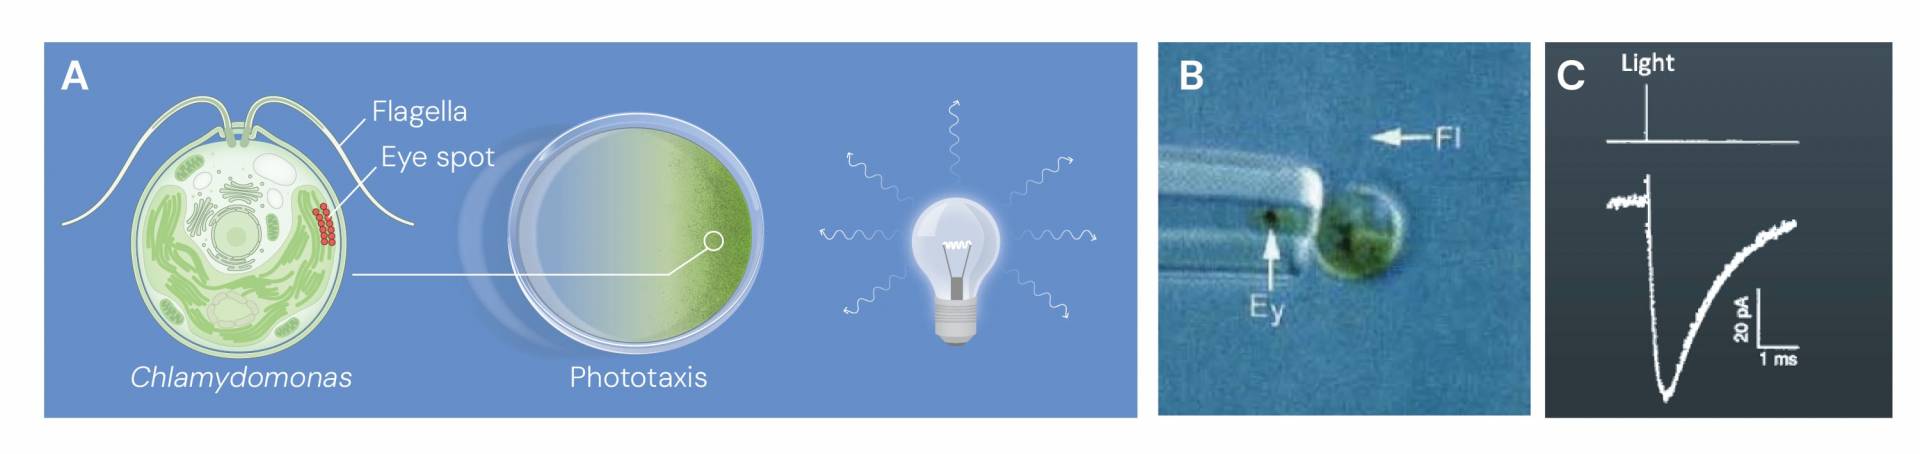
A. L’algue unicellulaire Chlamydomonas reinhardtii est un organisme modèle de laboratoire. Doté d’un stigma, ou tache oculaire (eye spot en anglais), elle peut se diriger vers une source de lumière (phototactisme).
B. Un mutant dépourvu de paroi maintenu en place par une pipette. Les courants électriques qui traversent la membrane plasmique sont ensuite enregistrés 1. Ey : stigma; Fl, flagelle.
C. Enregistrement des courants électriques à travers la membrane plasmique suite à une stimulation lumineuse 2.
Des travaux ultérieurs, en collaboration avec le laboratoire de Georg Nagel, consistèrent à faire exprimer, dans des ovocytes de xénope, les gènes supposés coder les canaux ioniques sensibles à la lumière. L’étude électrophysiologique de ces ovocytes permit de montrer que Chlamydomonas reinhardtii produit en fait deux de ces types de canaux :
- la channelrhodopsine-1 (ChR1), sensible au vert et laissant passer les ions H+ ;
- la channelrhodopsine-2 (ChR2), sensible au bleu et laissant entrer les cations dans la cellule de manière non sélective 1.
La channelrhodopsine-2 est responsable d’une dépolarisation très rapide suite à une stimulation par de la lumière bleue et cette dépolarisation se maintient, de manière atténuée, tant que l’éclairement se poursuit (Figure 2).
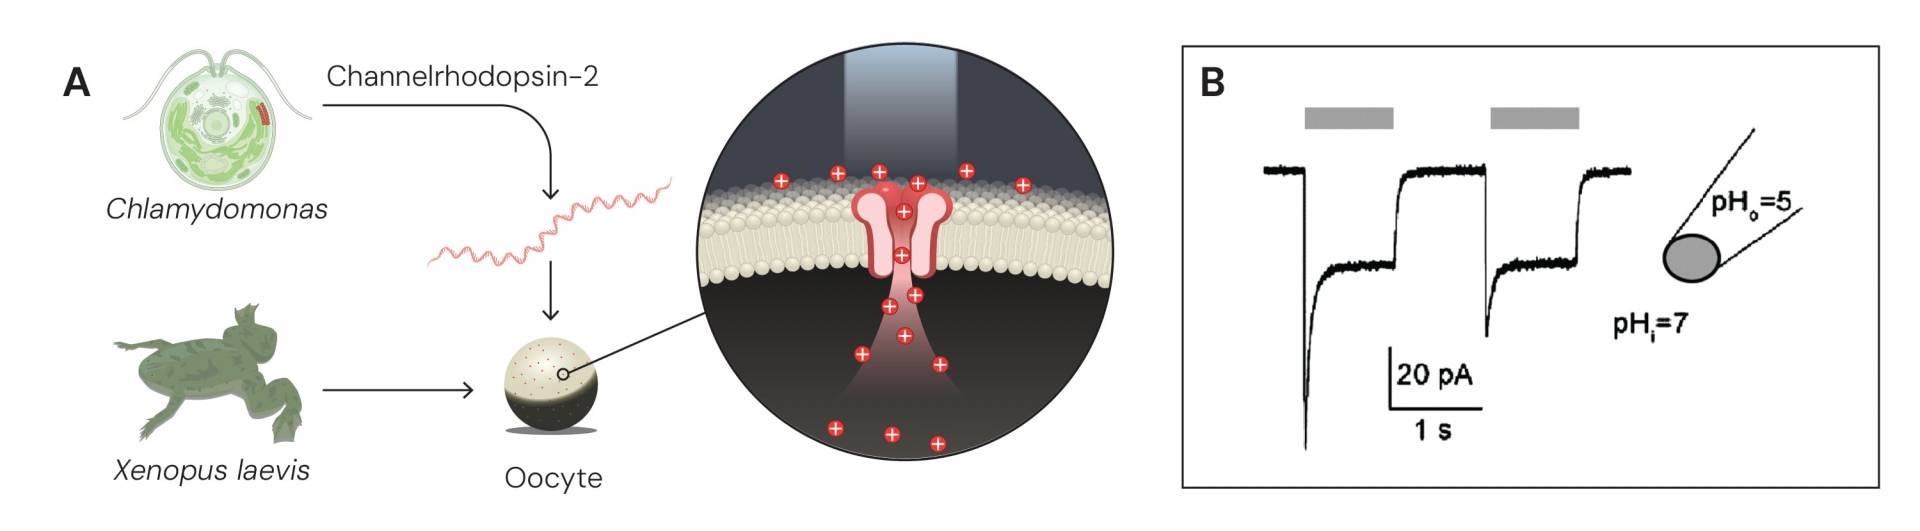
A. Le gène codant la channelrhodopsine-2 est introduit dans un ovocyte de xénope.
B. Enregistrement des courants électriques induits par la lumière (rectangles gris) 1.
Plus tard, le laboratoire de Karl Deisseroth fit s’exprimer la ChR2 dans des neurones de mammifères en culture et montra que ceux-ci devenaient photosensibles, produisant des potentiels d’action suite à une stimulation lumineuse appropriée (Figure 3) 1.

A. Des neurones en culture sont génétiquement modifiés pour exprimer le gène codant la channelrhodopsine-2.
B. Trains de potentiels d’action induit par des stimulations lumineuses à différentes fréquences 1.
Ces travaux se poursuivirent in vivo chez la souris où, grâce à des vecteurs viraux, des populations neuronales bien précises purent être modifiées génétiquement pour exprimer ChR2. Il devint alors possible d’activer spécifiquement les circuits impliquant ces neurones pour en étudier les implications fonctionnelles chez des souris vivantes et éveillées, grâce à des fibres optiques implantées dans le cerveau des animaux. De premiers tests permirent de confirmer l’efficacité de tels systèmes en faisant s’exprimer ChR2 dans le cortex moteur responsable du mouvement des vibrisses (les « moustaches » de la souris). La stimulation lumineuse de ces neurones provoquait alors le mouvement des vibrisses (Figure 4)é 1.
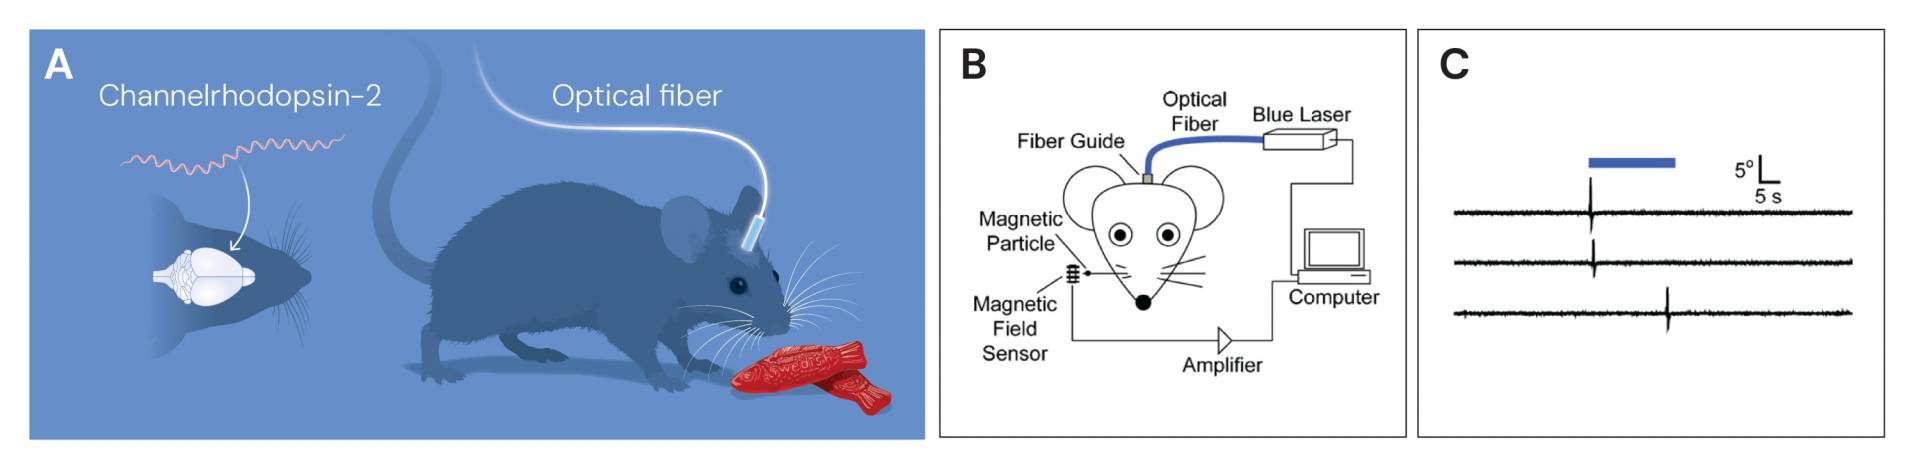
A. Des neurones sont modifiés génétiquement, à l’aide de vecteurs viraux, pour exprimer le gène codant la channelrhodopsine-2. Les souris peuvent ensuite être stimulées par de la lumière grâce à une fibre optique implantée dans le cortex moteur au travers d’un guide fixé sur leur boîte crânienne. La lumière produite ne diffuse pas dans l’ensemble du cerveau, mais reste localisée à proximité de la fibre.
B. Principe du test de détection du mouvement des vibrisses suite à une stimulation lumineuse.
C. Enregistrement du mouvement des vibrisses induit par la lumière bleue (barre bleue) 1.
Si la channelrhodopsine-2 permet d’activer les neurones, il existe également, dans la boîte à outils de l’optogénétique, des protéines permettant d’inhiber l’activité des neurones en réponse à la lumière. Ces protéines sont des pompes à ions qui, en réponse à la lumière, provoquent une hyperpolarisation de la cellule. Ces pompes n’étant pas excitées par les mêmes longueurs d’ondes que la channelrhodopsine-2 (vert-jaune pour les premières, bleu pour la seconde), il est possible de concevoir des systèmes optogénétiques complexes, où différentes populations de neurones peuvent être activées ou inhibées.
L’un des avantages de l’optogénétique est de permettre, en fonction de l’endroit où est implantée la fibre optique, de manipuler l’activité d’une population de neurones d’intérêt dans sa globalité, en illuminant la région contenant les corps cellulaires, ou de sous-ensembles de cette population qui diffèrent au niveau de leur connectivité, en illuminant les régions cibles de leurs projections (contenant les terminaisons synaptiques). Des groupes de neurones que l’on croyait jusqu’alors homogènes, par exemple sur la base du neurotransmetteur produit, se sont ainsi révélés être en réalité composés de différents circuits. Par exemple, il a été montré chez la souris que le contrôle du comportement parental par les neurones d’une région de l’hypothalamus repose sur une organisation modulaire. En effet, des sous-groupes de ces neurones présentant une connectivité spécifique (en termes d’afférences et de projections) se révèlent être spécialisés dans différents aspects de la parentalité. La manipulation optogénétique de ces sous-ensembles au travers de fibres optiques localisées dans leurs différentes cibles a ainsi montré que les soins maternels mettent en jeu au moins trois circuits différents : un est impliqué dans les interactions motrices avec les petits, un autre contrôle la motivation à les rechercher et un troisième régule les interactions sociales avec les autres adultes 1. Les comportements et états émotionnels complexes peuvent donc être vus comme la résultante de l’activation de différents flux d’informations plutôt que comme provenant d’un processus unique.
En définitive, si l’optogénétique a révolutionné les neurosciences, c’est grâce à la possibilité qu’elle offre de contrôler spécifiquement l’activité de certaines cellules avec une résolution spatiale et une résolution temporelle bien supérieures aux approches classiques. En effet, la stimulation par électrodes souffre d’une faible résolution spatiale (de nombreux neurones sont activés au voisinage de l’électrode) tandis que les approches pharmacologiques présentent une faible résolution temporelle à cause du temps que les molécules mettent à diffuser, puis à être éliminées. Dans le cas de l’optogénétique, l’excellente résolution spatiale est permise à la fois par la zone d’implantation de la fibre optique (la lumière ne diffusant pas dans tout le cerveau) et par le ciblage génétique des cellules (au sein de la zone éclairée, seules les cellules exprimant la protéine sensible à la lumière répondent à celle-ci). La résolution temporelle très fine apportée par l’optogénétique tient quant à elle à la rapidité de la réponse des canaux ioniques sensibles à la lumière, qui réagissent en quelques microsecondes à la stimulation lumineuse.
Pour aller plus loin, voir l’article Principes et applications de l’optogénétique en neuroscience, Guillaume P. Dugué, Ludovic Tricoire, Med Sci (Paris) 31 (3) 291-303 (2015), DOI: 10.1051/medsci/20153103015